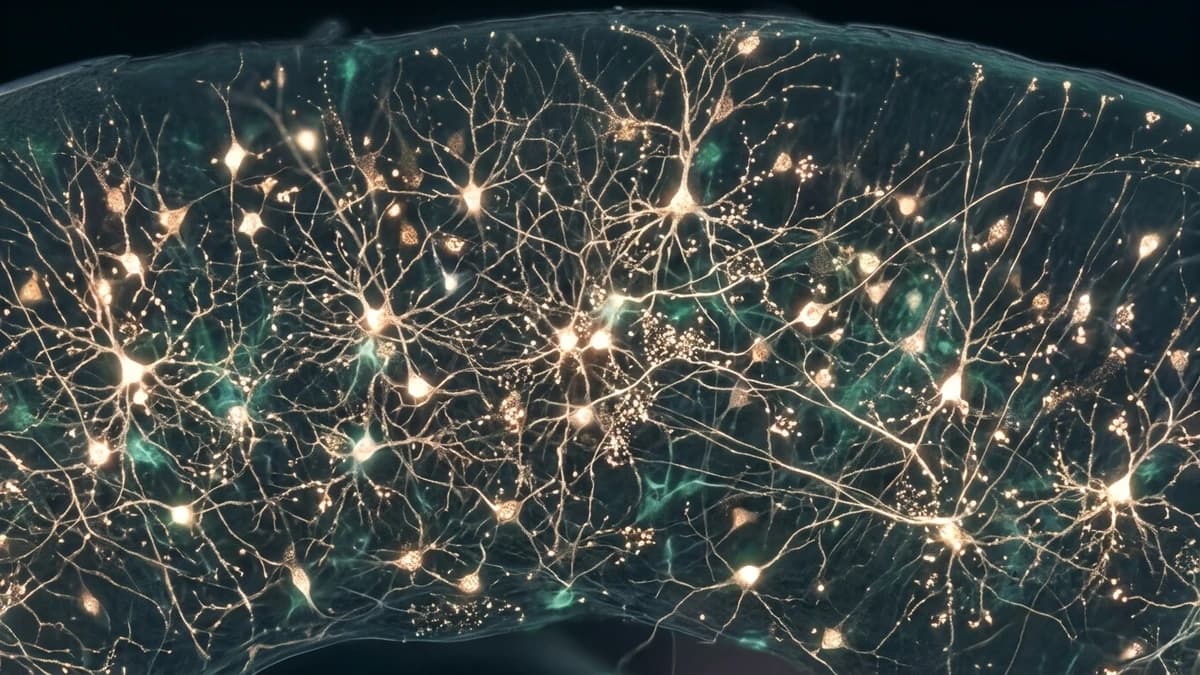
La investigación internacional publicada en 2026 demuestra que la corteza somatosensorial primaria —el territorio encargado de integrar la copiosa afluencia de percepciones propioceptivas, térmicas y sensoriales del organismo— alberga el centro neurálgico donde se registra el Proceso S. A medida que las neuronas piramidales de este estrato procesan estímulos mecánicos sin descanso a lo largo de la jornada, su alto consumo metabólico agota las reservas intracelulares de adenosín trifosfato (ATP). La degradación enzimática constante del ATP libera monofosfato de adenosina (AMP), el cual es fragmentado por la enzima ecto-5'-nucleotidasa de membrana, vertiendo adenosina libre al fluido intersticial circundante.
La adenosina extracelular se acopla con alta afinidad química a los receptores purinérgicos inhibitorios A1 y estimulatorios A2A presentes en las espinas dendríticas de las neuronas de la capa 5b. A lo largo de una vigilia prolongada, esta cascada bioquímica recluta y autofosforila la enzima CaMKII, promoviendo la fosforilación orquestada de centenares de proteínas estructurales en la densidad postsináptica, entre las que destacan la proteína asociada a microtúbulos 2 (MAP2) y las subunidades GluA1 de los receptores glutamatérgicos AMPA.
A medida que se multiplican los dominios fosforilados a lo largo de las horas, la conformación biofísica de las conexiones sinápticas se altera, elevando la intensidad de estímulo requerida para transmitir información de alta frecuencia en la corteza. En el plano funcional, este entorpecimiento sináptico se traduce en fatiga intelectual, ralentización en los tiempos de respuesta refleja y fallos de retención en la memoria operativa. Al alcanzarse la saturación proteica, las neuronas dejan de emitir descargas aisladas rápidas y entran en un régimen rítmico de hiperpolarización oscilatoria de entre 0,5 y 4 hercios, la huella característica del sueño delta profundo en los registros electroencefalográficos.
| Dimensión Neurofisiológica / Biomarcador |
Presión Homeostática (Proceso S) |
Marcapasos Circadiano (Proceso C) |
Efecto de la Privación Aguda (>24h) |
Dianas de Intervención Clínica |
| Localización Anatómica Primaria |
Capa 5b de la corteza somatosensorial primaria |
Núcleo supraquiasmático (NSQ) en hipotálamo |
Sobrecarga de estrés oxidativo en neuronas |
Moduladores de receptores A1 en capa 5b |
| Marcador Bioquímico Rector |
Adenosina libre y fosforilación de CaMKII |
Fluctuación rítmica de melatonina y cortisol |
Elevación exponencial de fosfoproteínas |
Activadores de fosfatasas neuronales |
| Sincronizador Ambiental Clave |
Tiempo total en vigilia y esfuerzo cognitivo |
Exposición lumínica a la luz solar (480 nm) |
Proceso independiente de los fotones de luz |
Fotobiomodulación y filtros de luz azul |
| Mecanismo Fisiológico de Limpieza |
Evacuación glinfática durante el sueño N3 |
Reajuste periódico por el ciclo día-noche |
Microgliosis reactiva y daño en espinas |
Optimización de canales astrocitarios AQP4 |
| Expresión Clínica Fundamental |
Potencia y duración del sueño lento delta |
Preferencia de horario de sueño (cronotipo) |
Colapso severo de la atención y del ánimo |
Agentes alostéricos positivos específicos |
Durante los estadios de sueño de ondas lentas desencadenados por este interruptor somatosensorial, el tejido cerebral experimenta una remodelación espacial microscópica imprescindible para la preservación cognitiva. Los canales de acuaporina-4 (AQP4), anclados en los pies vasculares de los astrocitos que envuelven los capilares, incrementan el caudal convectivo de líquido cefalorraquídeo a través del parénquima cerebral en cerca de un 60%.
Este circuito de limpieza biológica, conocido como sistema glinfático, barre y evacua la adenosina acumulada, los fragmentos neurotóxicos de proteína beta-amiloide y los ovillos de proteína tau hiperfosforilada. De forma simultánea, enzimas fosfatasas desfosforilan los andamios postsinápticos, devolviendo a los circuitos neuronales su umbral de excitabilidad original. Cuando el individuo despierta tras un ciclo de descanso adecuado, el cuentakilómetros bioquímico de adenosina queda restablecido a cero, listo para reiniciar una nueva jornada de actividad.
Los análisis del equipo de Zúrich y Harvard ilustran las graves consecuencias neurobiológicas que se desencadenan cuando la deuda homeostática de sueño se desoye de forma sistemática por horarios laborales nocturnos o insomnio pertinaz. En modelos sometidos a vigilia forzada continua, la saturación persistente de adenosina y la entrada desregulada de iones de calcio provocan una acumulación crítica de especies reactivas de oxígeno en el retículo endoplasmático de las neuronas somatosensoriales.
Sometidas a este estrés oxidativo continuado, las células de la microglía —el sistema inmunitario de guardia en el tejido cerebral— mudan de su labor de vigilancia protectora a un estado proinflamatorio lesivo (fenotipo reactivo M1). Estas microglías activadas segregan citocinas inflamatorias como la interleucina-1 beta (IL-1β) y el factor de necrosis tumoral alfa (TNF-α), iniciando una fagocitosis descontrolada que poda espinas dendríticas perfectamente sanas en el hipocampo y la corteza prefrontal. Esta ruta neuroinflamatoria establece el vínculo fisiopatológico directo entre las noches de insomnio repetidas, el deterioro cognitivo precoz y la aceleración de patologías neurodegenerativas graves.
El desciframiento molecular de este sensor somatosensorial promete abrir una nueva época en la farmacología de los trastornos del sueño:
- Superación de las Benzodiacepinas e Hipnóticos Z: Los inductores del sueño empleados en la actualidad potencian indiscriminadamente los canales de cloruro mediados por receptores GABA-A en todo el encéfalo. Esta sedación farmacológica deprime las fases de ondas lentas N3 y el sueño REM, deparando un descanso biológico de deficiente calidad y un riesgo elevado de tolerancia y dependencia química.
- Creación de Moduladores Alostéricos Selectivos: La identificación de los receptores característicos de las neuronas de la capa 5b permite ensayar moduladores alostéricos positivos dirigidos exclusivamente a los receptores A1 somatosensoriales. El propósito es intensificar la sensibilidad de estas células a la adenosina producida de manera natural por el paciente, restituyendo la arquitectura genuina del sueño profundo sin provocar aturdimiento matinal ni afectación respiratoria.
- Abordaje de Cuadros Neuropsiquiátricos: La alteración de los mecanismos que regulan la presión de sueño interviene directamente en la génesis de cuadros depresivos severos y desórdenes afectivos bipolares. La modulación dirigida de estos sensores metabólicos ofrece una vía esperanzadora para restituir la plasticidad de las sinapsis y regular los circuitos del estado de ánimo quebrantados por el desequilibrio en el descanso.
Fuentes Oficiales y Referencias Científicas:
- Harvard Medical School, Department of Neurobiology — Cortical Neuronal Populations in Sleep Homeostasis Research
- University of Zurich, Institute of Pharmacology and Toxicology — Sleep Architecture and Molecular Markers Study (2026)
- Nature Neuroscience — "A specific cortical population of Layer 5b neurons computes homeostatic sleep pressure" (2026)
- Cell — "Molecular mechanisms of adenosine accumulation and synaptic phosphoproteomics during wakefulness"
- National Institute of Neurological Disorders and Stroke (NINDS) — Brain Basics: Understanding Sleep and Glymphatic Clearance
Artículos Relacionados: